
De verborgen bondgenoten van de pancreas: hoe immuuncellen de bètacelmassa mogelijk helpen uitbreiden.
Wat als ons lichaam zelf de hoeveelheid insulineproducerende bètacellen kan aanpassen wanneer dat nodig is? Het klinkt als een droom voor wetenschappers die zoeken naar nieuwe manieren om diabetes te behandelen. Toch gebeurt dit van nature tijdens de zwangerschap. Naarmate de zwangerschap vordert, stijgt de behoefte aan insuline om de veranderende stofwisseling van de moeder en de groeiende foetus op te vangen. De pancreas speelt daarop in door haar insulineproducerende bètacelmassa tijdelijk uit te breiden. Na de geboorte, wanneer de insulinebehoefte opnieuw afneemt, keert de bètacelmassa geleidelijk terug naar haar oorspronkelijke omvang.
Juist die natuurlijke en omkeerbare aanpassing maakt zwangerschap interessant voor diabetesonderzoek. Bij mensen met diabetes zijn er te weinig goed functionerende bètacellen om voldoende insuline te produceren en de bloedsuikerspiegel onder controle te houden. Door te begrijpen hoe de bètacelmassa tijdens de zwangerschap toeneemt en daarna weer afneemt, kunnen we inzicht krijgen in de mechanismen die deze plasticiteit sturen. Die kennis kan op termijn bijdragen aan nieuwe strategieën om de verloren gegane bètacelmassa bij diabetes op een gecontroleerde manier te herstellen.
Maar wie stuurt die opmerkelijke aanpassing van de pancreas? Een mogelijke speler bevindt zich vlak naast de bètacellen: de macrofaag.
De onverwachte hoofdrolspeler:
Macrofagen zijn immuuncellen die vooral bekendstaan als de ‘opruimers’ van ons lichaam. Naast het opruimen van beschadigde cellen en verdedigen van het lichaam, gaat hun rol echter veel verder. In de insulineproducerende eilandjes van de pancreas behoren ze tot de meest voorkomende immuuncellen en reageren ze voortdurend op veranderingen in hun omgeving (figuur 1).
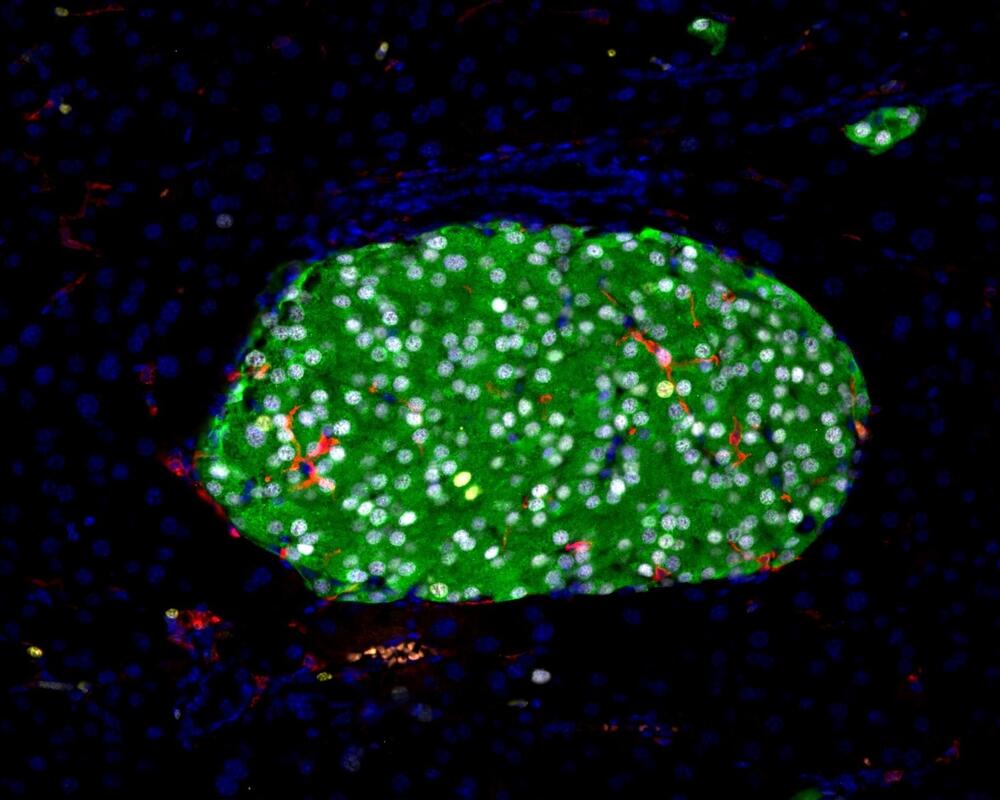
Eerder onderzoek wees al op een mogelijke rol van macrofagen bij de ontwikkeling van de bètacellen. Toch blijft hun rol bij de natuurlijke uitbreiding van de bètacelmassa tijdens de zwangerschap onduidelijk. De centrale vraag van mijn masterproef was dan ook: dragen macrofagen bij aan deze tijdelijke uitbreiding van de bètacelmassa?
Een opvallend patroon:
Om dit te onderzoeken, brachten we eerst in kaart hoe de bètacelmassa, bètaceldeling en het aantal macrofagen veranderden tijdens de zwangerschap en postpartum. De bètaceldeling bleek midden in de zwangerschap een duidelijke piek te bereiken. Rond dag 14.5 van de zwangerschap deelden de bètacellen het meest. Daarna nam de delingsactiviteit geleidelijk af en vijf dagen postpartum was deze opnieuw vergelijkbaar met de delingsactiviteit van niet-zwangere muizen.
De macrofagen volgden echter een heel ander patroon. Hun aantal in de eilandjes van de pancreas bleef tijdens de zwangerschap relatief hetzelfde. Pas na de geboorte nam het aantal duidelijk toe. De twee processen liepen dus niet parallel; de bètaceldeling piekte tijdens de zwangerschap, terwijl het aantal macrofagen pas postpartum toenam.
Geen macrofagen, toch celdeling:
Maar wat gebeurt er met de bètacellen wanneer het aantal macrofagen sterk wordt verminderd? Om dit te onderzoeken, gebruikten we een genetisch muismodel waarmee de meeste macrofagen werden verwijderd.
Zelfs na het weghalen van het grootste deel van de eiland-macrofagen bleven de bètacellen zich tijdens de zwangerschap even sterk delen. Het tekort aan macrofagen leek de sterke toename in bètaceldeling dus nauwelijks te verstoren (figuur 2A). Dit wijst erop dat het volledige arsenaal van macrofagen niet noodzakelijk is om deze tijdelijke toename in bètaceldeling te veroorzaken.

Opvallend genoeg zagen we wel een verschil wanneer we naar de totale bètacelmassa keken. Bij zwangere muizen nam de bètacelmassa, zoals verwacht, duidelijk toe. Wanneer de macrofagen werden verwijderd, was die uitbreiding echter minder sterk (figuur 2B). Hoewel de bètacellen dus even sterk bleven delen, leidde dit niet tot dezelfde toename in totale bètacelmassa. Dit suggereert dat macrofagen mogelijk niet rechtstreeks de deling van bètacellen aansturen, maar wel betrokken zijn bij andere processen die bepalen hoeveel bètacelmassa uiteindelijk wordt opgebouwd.
Vervolgens wilden we weten of deze verminderde uitbreiding van de bètacelmassa ook gevolgen had voor de bètacelfunctie. Tijdens de zwangerschap neemt de behoefte aan insuline toe. De uitbreiding van de bètacelmassa helpt de pancreas om voldoende insuline te produceren en zo de bloedsuikerspiegel stabiel te houden. Toch bleken de muizen zonder macrofagen hun bloedsuikerspiegel goed te kunnen reguleren.
De verminderde uitbreiding van de bètacelmassa na macrofaag-depletie had dus geen onmiddellijk meetbaar effect op de glucosehuishouding tijdens de zwangerschap. De pancreas lijkt nog over voldoende capaciteit te beschikken om de bloedsuikerspiegel stabiel te houden, ondanks de kleinere toename in bètacelmassa.
Een onverwachte rol met nog veel vraagtekens:
Toch moeten we deze resultaten voorzichtig interpreteren, aangezien de depletie van de macrofagen onvolledig was. De overgebleven macrofagen kunnen dus nog steeds invloed hebben gehad op de bètacellen. Bovendien zagen we dat het aantal macrofagen vooral postpartum toenam, terwijl de bètaceldeling tegen die tijd alweer was afgenomen. Dit roept de vraag op of macrofagen bijdragen aan de terugkeer van de bètacelmassa naar haar oorspronkelijke omvang. Of ze daarbij daadwerkelijk een rol spelen, moet verder worden onderzocht.
Samen geven onze resultaten een eerste aanwijzing dat macrofagen deel uitmaken van het systeem waarmee de pancreas zijn bètacelmassa tijdens de zwangerschap aanpast. Ze lijken daarbij niet simpelweg de bètacellen aan te zetten tot delen, maar via andere processen bij te dragen aan de uitbreiding van de insulineproducerende massa. Door beter te begrijpen hoe macrofagen en bètacellen tijdens deze natuurlijke en omkeerbare aanpassing met elkaar samenwerken, kunnen we meer inzicht krijgen in hoe de bètacelmassa wordt gereguleerd. Op lange termijn kan die kennis bijdragen aan nieuwe strategieën om de verloren gegane bètacelmassa bij mensen met diabetes te herstellen.
Bibliografie
1.Federation ID. The Diabetes Atlas 2025 [Available from: https://diabetesatlas.org/resources/idf-diabetes-atlas-2025/. 2. Tan SY, Mei Wong JL, Sim YJ, Wong SS, Mohamed Elhassan SA, Tan SH, et al. Type 1 and 2 diabetes mellitus: A review on current treatment approach and gene therapy as potential intervention. Diabetes Metab Syndr. 2019;13(1):364-72. 3. Cosentino C, Regazzi R. Crosstalk between Macrophages and Pancreatic β-Cells in Islet Development, Homeostasis and Disease. Int J Mol Sci. 2021;22(4). 4. Zhang H, Wei Y, Wang Y, Liang J, Hou Y, Nie X, et al. Emerging Diabetes Therapies: Regenerating Pancreatic β Cells. Tissue Eng Part B Rev. 2024;30(6):644-56. 5. Rieck S, Kaestner KH. Expansion of beta-cell mass in response to pregnancy. Trends Endocrinol Metab. 2010;21(3):151-8. 6. Ernst S, Demirci C, Valle S, Velazquez-Garcia S, Garcia-Ocaña A. Mechanisms in the adaptation of maternal β-cells during pregnancy. Diabetes Manag (Lond). 2011;1(2):239-48. 7. Bourgeois S, Coenen S, Degroote L, Willems L, Van Mulders A, Pierreux J, et al. Harnessing beta cell regeneration biology for diabetes therapy. Trends Endocrinol Metab. 2024;35(11):951-66. 8. Alcibahy Y, Darwish R, Butler AE, Moin ASM. Pancreatic β-cell turnover in health and disease. Diabetes Obes Metab. 2026;28(1):27-49. 9. Arutyunyan IV, Fatkhudinov TK, Makarov AV, Elchaninov AV, Sukhikh GT. Regenerative medicine of pancreatic islets. World J Gastroenterol. 2020;26(22):2948-66. 10. Spears E, Serafimidis I, Powers AC, Gavalas A. Debates in Pancreatic Beta Cell Biology: Proliferation Versus Progenitor Differentiation and Transdifferentiation in Restoring β Cell Mass. Front Endocrinol (Lausanne). 2021;12:722250. 11. Desentis-Desentis MF. Regenerative approaches to preserve pancreatic β-cell mass and function in diabetes pathogenesis. Endocrine. 2022;75(2):338-50. 12. Zhong F, Jiang Y. Endogenous Pancreatic β Cell Regeneration: A Potential Strategy for the Recovery of β Cell Deficiency in Diabetes. Front Endocrinol (Lausanne). 2019;10:101. 13. Vasavada RC, Dhawan S. Harnessing beta-cell replication: advancing molecular insights to regenerative therapies in diabetes. Front Endocrinol (Lausanne). 2025;16:1612576. 14. Docherty FM, Sussel L. Islet Regeneration: Endogenous and Exogenous Approaches. Int J Mol Sci. 2021;22(7). 15. Jiang Y, Chen A, Kline D, Liu Q, Ma J, Wang Y, et al. Polarized macrophages promote gestational beta cell growth through extracellular signal-regulated kinase 5 signalling. Diabetes Obes Metab. 2022;24(9):1721-33. 16. Hakonen E, Ustinov J, Palgi J, Miettinen PJ, Otonkoski T. EGFR signaling promotes βcell proliferation and survivin expression during pregnancy. PLoS One. 2014;9(4):e93651. 17. Yang W, Jiang Y, Wang Y, Zhang T, Liu Q, Wang C, et al. Placental growth factor in beta cells plays an essential role in gestational beta-cell growth. BMJ Open Diabetes Res Care. 2020;8(1). 18. Genevay M, Pontes H, Meda P. Beta cell adaptation in pregnancy: a major difference between humans and rodents? Diabetologia. 2010;53(10):2089-92 19. Endo A, Imai J, Izumi T, Kawana Y, Sugawara H, Kohata M, et al. Phagocytosis by macrophages promotes pancreatic β cell mass reduction after parturition in mice. Dev Cell. 2023;58(19):1819-29.e5. 20. Monajemi M, Craciun AS, Huang Q, Dai L, Mojibian M, Crome SQ, et al. Human and mouse regenerative macrophages enhance beta cell survival, function, and proliferation. Islets. 2026;18(1):2659457. 21. Chittezhath M, Gunaseelan D, Zheng X, Hasan R, Tay VSY, Lim ST, et al. Islet macrophages are associated with islet vascular remodeling and compensatory hyperinsulinemia during diabetes. Am J Physiol Endocrinol Metab. 2019;317(6):E1108-E20. 22. Geutskens SB, Otonkoski T, Pulkkinen MA, Drexhage HA, Leenen PJ. Macrophages in the murine pancreas and their involvement in fetal endocrine development in vitro. J Leukoc Biol. 2005;78(4):845-52. 23. Jensen DM, Hendricks KV, Mason AT, Tessem JS. Good Cop, Bad Cop: The Opposing Effects of Macrophage Activation State on Maintaining or Damaging Functional β-Cell Mass. Metabolites. 2020;10(12). 24. Van Gassen N, Van Overmeire E, Leuckx G, Heremans Y, De Groef S, Cai Y, et al. Macrophage dynamics are regulated by local macrophage proliferation and monocyte recruitment in injured pancreas. Eur J Immunol. 2015;45(5):1482-93. 25. Calderon B, Carrero JA, Ferris ST, Sojka DK, Moore L, Epelman S, et al. The pancreas anatomy conditions the origin and properties of resident macrophages. J Exp Med. 2015;212(10):1497-512. 26. Van Gassen N, Staels W, Van Overmeire E, De Groef S, Sojoodi M, Heremans Y, et al. Concise Review: Macrophages: Versatile Gatekeepers During Pancreatic β-Cell Development, Injury, and Regeneration. Stem Cells Transl Med. 2015;4(6):555-63. 27. Aamodt KI, Powers AC. Signals in the pancreatic islet microenvironment influence βcell proliferation. Diabetes Obes Metab. 2017;19 Suppl 1(Suppl 1):124-36. 28. Banaei-Bouchareb L, Gouon-Evans V, Samara-Boustani D, Castellotti MC, Czernichow P, Pollard JW, et al. Insulin cell mass is altered in Csf1op/Csf1op macrophage-deficient mice. J Leukoc Biol. 2004;76(2):359-67. 29. Riley KG, Pasek RC, Maulis MF, Dunn JC, Bolus WR, Kendall PL, et al. Macrophages are essential for CTGF-mediated adult β-cell proliferation after injury. Mol Metab. 2015;4(8):584- 91. 30. Brissova M, Aamodt K, Brahmachary P, Prasad N, Hong JY, Dai C, et al. Islet microenvironment, modulated by vascular endothelial growth factor-A signaling, promotes β cell regeneration. Cell Metab. 2014;19(3):498-511. 31. Tessem JS, Jensen JN, Pelli H, Dai XM, Zong XH, Stanley ER, et al. Critical roles for macrophages in islet angiogenesis and maintenance during pancreatic degeneration. Diabetes. 2008;57(6):1605-17. 32. Xiao X, Gaffar I, Guo P, Wiersch J, Fischbach S, Peirish L, et al. M2 macrophages promote beta-cell proliferation by up-regulation of SMAD7. Proc Natl Acad Sci U S A. 2014;111(13):E1211-20. 33. Thorens B. The required beta cell research for improving treatment of type 2 diabetes. J Intern Med. 2013;274(3):203-14. 34. Takahashi M, Miyatsuka T, Suzuki L, Osonoi S, Himuro M, Miura M, et al. Biphasic changes in β-cell mass around parturition are accompanied by increased serotonin production. Sci Rep. 2020;10(1):4962. 35. Baeyens L, Hindi S, Sorenson RL, German MS. β-Cell adaptation in pregnancy. Diabetes Obes Metab. 2016;18 Suppl 1(Suppl 1):63-70. 36. Ruiz-Otero N, Tessem JS, Banerjee RR. Pancreatic islet adaptation in pregnancy and postpartum. Trends Endocrinol Metab. 2024;35(9):834-47. 37. Röszer T. Understanding the Biology of Self-Renewing Macrophages. Cells. 2018;7(8). 38. Hashimoto D, Chow A, Noizat C, Teo P, Beasley MB, Leboeuf M, et al. Tissue-resident macrophages self-maintain locally throughout adult life with minimal contribution from circulating monocytes. Immunity. 2013;38(4):792-804. 39. Aegerter H, Lambrecht BN, Jakubzick CV. Biology of lung macrophages in health and disease. Immunity. 2022;55(9):1564-80. 40. Yona S, Kim KW, Wolf Y, Mildner A, Varol D, Breker M, et al. Fate mapping reveals origins and dynamics of monocytes and tissue macrophages under homeostasis. Immunity. 2013;38(1):79-91. 41. Petit M, Weber-Delacroix E, Lanthiez F, Barthélémy S, Guillou N, Firpion M, et al. Visualizing the spatial organization of monocytes, interstitial macrophages, and tissue-specific macrophages in situ. Cell Rep. 2024;43(10):114847. 42. Dick SA, Wong A, Hamidzada H, Nejat S, Nechanitzky R, Vohra S, et al. Three tissue resident macrophage subsets coexist across organs with conserved origins and life cycles. Sci Immunol. 2022;7(67):eabf7777. 43. Guria S, Hoory A, Das S, Chattopadhyay D, Mukherjee S. Adipose tissue macrophages and their role in obesity-associated insulin resistance: an overview of the complex dynamics at play. Biosci Rep. 2023;43(3). 44. Orliaguet L, Dalmas E, Drareni K, Venteclef N, Alzaid F. Mechanisms of Macrophage Polarization in Insulin Signaling and Sensitivity. Front Endocrinol (Lausanne). 2020;11:62. 45. Bosch AJT, Keller L, Steiger L, Rohm TV, Wiedemann SJ, Low AJY, et al. CSF1R inhibition with PLX5622 affects multiple immune cell compartments and induces tissue-specific metabolic effects in lean mice. Diabetologia. 2023;66(12):2292-306. 46. Butler AE, Cao-Minh L, Galasso R, Rizza RA, Corradin A, Cobelli C, et al. Adaptive changes in pancreatic beta cell fractional area and beta cell turnover in human pregnancy. Diabetologia. 2010;53(10):2167-76.